「あの相手は危険だ」を脳はどう学び直すのか
海馬―扁桃体―側座核をつなぐ回路が、個体の記憶を保ったまま社会的な「感情価」を書き換える
Science, 2026
Neural circuits for valence updating in social memory
社会的記憶における感情価更新の神経回路
Narutoshi Suto et al. The University of Tokyo
First author: Narutoshi Suto / Last author: Teruhiro Okuyama
First affiliation: Laboratory of Behavioral Neuroscience, Institute for Quantitative Biosciences (IQB), The University of Tokyo, Tokyo, Japan.
Abstract
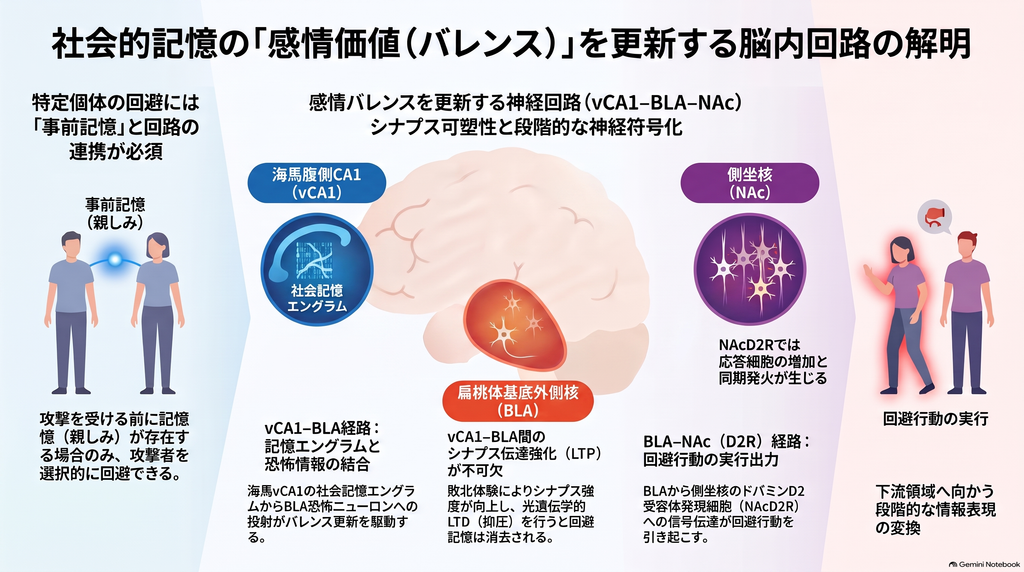
私たちは、知っている相手に対して常に同じ感情を抱くわけではない。以前は安全だった相手でも、攻撃された経験があれば「危険な相手」として避けるようになる。一方で重要なのは、その相手が「誰であるか」という記憶そのものは失われず、相手に付随する「安全/危険」といった感情的な価値だけが更新されることである。本研究では、これまで中立的だった馴染みのマウスを人工的に攻撃者へ変化させる行動モデルを構築し、特定個体に対する社会的感情価が脳内でどのように更新されるのかを解析した。その結果、個体の社会記憶を保持する海馬腹側CA1(ventral CA1; vCA1)から、感情処理を担う扁桃体基底外側核(basolateral amygdala; BLA)、さらに側座核(nucleus accumbens; NAc)へ至るvCA1–BLA–NAc回路が、負の社会的感情価の更新とその想起に重要であることが分かった。社会的敗北を経験すると、vCA1の社会記憶エングラムニューロンからBLAのRspo2陽性恐怖ニューロンへのシナプス結合が増強された。さらに下流では、BLAは既存ニューロンの応答強度を高めることで攻撃者を表現するのに対し、NAcのD2受容体発現ニューロン(NAcD2R)では、攻撃者に応答するニューロンそのものが新たに動員された。つまり脳は、「この個体が誰であるか」という比較的安定した記憶を海馬に維持しながら、その個体に対する「危険だから避けるべき」という感情価を下流回路で柔軟に更新していると考えられる。
Background
社会的敗北ストレスの研究では、攻撃を受けたマウスが他個体との交流全般を避けるgeneralized social avoidance(全般性社会回避)が広く研究されてきた。この表現型は、うつ病や社会不安障害のモデルとしても利用されている。しかし実際の社会生活では、危険なのは「他者すべて」ではなく、「以前自分を攻撃した特定の相手」であることが多い。そのため、特定個体を記憶し、その個体にだけ負の感情価を結びつける能力は適応的な社会行動に重要である。これまでの研究から、vCA1ニューロンが他個体に関する社会記憶を保持し、vCA1からNAcや内側前頭前皮質への投射を介して個体識別行動を駆動することが知られていた。一方、vCA1は感情処理に重要なBLAにも投射し、BLAはさらにNAcへ投射する。そこで著者らは、個体情報そのものを扱うvCA1–NAc直接経路とは別に、vCA1–BLA–NAc間接経路が「その相手をどう感じるか」という感情価更新を担うのではないかと考えた。
Methods
著者らは、もともと攻撃性を示さないPR-Creマウスの視床下部腹内側核腹外側部(vMHvl)にAAV8-hSyn(Gq)-mCherryを導入した。その後、deschloroclozapine(DCZ)0.1 mg/kgを投与してvMHvlのプロゲステロン受容体発現ニューロンを化学遺伝学的に活性化し、それまで中立だった個体を一時的に攻撃者へ変化させた。被験マウスには攻撃者候補と非攻撃者をあらかじめ72時間経験させ、社会記憶を形成させた。その後、攻撃者との10分間の社会的敗北と非攻撃者との10分間の交流を、2時間の間隔を空けて3日間繰り返した。さらに、光遺伝学的回路抑制、c-fos/TRE系を用いた社会記憶エングラム標識、ChR2によるエングラム操作、急性脳スライスでのホールセルパッチクランプ、optical-LTD、CaMKII阻害、自由行動下Ca²⁺イメージング、一般化線形モデル(GLM)、線形サポートベクターマシン(SVM)などを組み合わせ、回路・シナプス・単一細胞・神経集団の各階層から解析した。
結果
まず著者らは、特定個体だけを避けるためには、攻撃される前からその個体を知っている必要があることを示した。72時間の事前交流を行ったMemory (+) + DCZ群(n = 15)では、敗北後、攻撃者への匂い嗅ぎ時間だけが低下し、非攻撃者への探索は比較的保たれた。すなわち攻撃者だけを避けるspecific social avoidance(特異的社会回避)が生じた。一方、事前交流を行わなかったMemory (−) + DCZ群(n = 15)では、攻撃者だけでなく非攻撃者への探索も低下した。これは「誰に攻撃されたか」を特定できず、他個体全般を避ける状態になったと解釈できる。事前交流は行ったものの攻撃を経験しなかったMemory (+) + saline群(n = 10)では、どちらの個体に対する回避も生じなかった。したがって、負の体験そのものだけでなく、その体験を既存の「誰の記憶」と結びつけられることが、選択的な社会回避には必要であることが示された。
次に著者らは、更新された感情価を思い出す際にどの回路が必要なのかを調べた。vCA1からBLAへの投射を光遺伝学的に抑制すると、攻撃者への選択的回避が消失した。BLAのRspo2陽性恐怖ニューロンからNAcへの投射を抑制しても同様に回避が障害された。ところが、社会的馴染みの認識に関与するvCA1–NAc直接経路を抑制しても、攻撃者への選択的回避は維持された。これらの結果から、vCA1 → NAc:相手が「誰であるか」という社会記憶・馴染み、vCA1 → BLA → NAc:その相手に付与された感情価という機能分担が存在すると考えられた。
さらに著者らは、「マウスA」の記憶を保持するvCA1社会記憶エングラムニューロンをChR2で標識し、そのBLA投射軸索を足部ショックと同時に人工的に活性化した。すると、実際にはマウスAから攻撃されていないにもかかわらず、その後被験マウスはマウスAだけを選択的に回避するようになった。ところが、この人工的な感情価更新時にBLARspo2恐怖ニューロンをhM4Diで抑制すると、マウスAへの回避は形成されなかった。つまり、海馬にある「マウスA」という記憶をBLAの恐怖回路と結びつけるだけで、特定個体に対する負の感情価を人工的に形成できることが示された。
では、この結びつきはどのような物理的変化として保存されるのか。急性脳スライスで、vCA1社会記憶エングラムから入力を受けるBLARspo2ニューロンを記録したところ、社会的敗北を経験したDCZ群では、Saline群と比較してAMPA/NMDA比が有意に上昇した(p < 0.05)。解析対象はDCZ群が25細胞・7匹、Saline群が31細胞・6匹であった。これは、社会的敗北によってvCA1社会記憶エングラム → BLA恐怖ニューロン間にLTP様のシナプス増強が生じたことを意味する。さらに、いったん攻撃者への回避を形成した後、このシナプスへ1 Hz、900 pulsesの低頻度光刺激を加えてoptical-LTDを誘導すると、攻撃者への選択的回避が消失した。反対に、BLAのRspo2ニューロンでCaMKII阻害ペプチドAIPを発現させ、LTP形成を阻害しても、特異的社会回避は形成されなくなった。したがって、このシナプス増強は単なる相関ではなく、社会感情価の形成と維持そのものに必要であると考えられる。
続いて、感情価がBLAとNAcでどのように表現されるかを、自由行動下Ca²⁺イメージングで調べた。BLARspo2ニューロンでは、4匹のマウスから383細胞を3つのセッションにわたって追跡した。敗北後には攻撃者応答ニューロンの活動が強くなったものの、攻撃者応答・非攻撃者応答などのニューロン構成割合そのものには有意な変化がなかった(χ² = 2.15, p = 0.34)。つまりBLAは、既に存在する細胞の応答強度を変化させることで新しい感情価を表現していた。一方NAcでは、D1受容体発現ニューロンでは大きな変化がみられなかったが、D2受容体発現ニューロンでは敗北後、攻撃者応答ニューロンの割合そのものが増加した。NAcD2Rでは5匹・630細胞が追跡され、ニューロン構成比は有意に変化した(χ² = 7.08, p = 0.029)。さらに攻撃者応答ニューロンの活動強度も上昇していた。ところがBLAを化学遺伝学的に抑制すると、このNAcD2Rの再編成は起こらなくなった。BLA抑制条件では4匹・392細胞を解析し、構成比に有意な変化はなかった(χ² = 1.59, p = 0.45)。したがって、BLAからの感情情報を受けることによって初めて、NAcD2R神経集団が攻撃者を表すように再編成されると考えられる。
さらにGLMを用いた解析では、敗北後、BLARspo2とNAcD2Rニューロンが「攻撃者と非攻撃者のどちらにどの程度近いか」という相対距離をより強く符号化するようになった。SVMによる個体識別解析でも、NAcD2Rの神経活動のみから攻撃者を判別する精度は、敗北後のSession 3で84.3%まで上昇した。これらの変化はNAcD1Rではみられず、NAcD2RでもBLAを抑制すると消失した。
Discussion
本研究で示された重要な点は、脳が「その相手が誰なのか」という記憶と、「その相手をどう感じるのか」という感情価を、部分的に異なる神経回路として管理していることである。海馬vCA1には比較的安定した個体の社会記憶が保存されている。そこからNAcへの直接経路は、「この個体を以前に会ったことがある」という社会的馴染みの識別に使われる。一方で、その人物に新たに「危険」という意味を付与するときには、vCA1からBLAを経由してNAcへ至る別ルートが利用される。特に興味深いのは、情報表現の仕方が脳領域ごとに変化していた点である。vCA1では安定した個体記憶を保持し、BLAでは既存の特定ニューロン群の発火強度を増大させ、NAcD2Rでは攻撃者に応答する神経細胞を新たに動員して神経集団そのものを再編成する。つまり、「Aという人物そのものの記憶」を書き換えることなく、「Aは危険だから避けるべきだ」という意味だけを追加する階層的な仕組みが存在すると考えられる。
また、BLAやNAcの社会刺激表現は日をまたぐと一定程度変化する、いわゆるrepresentational drift(表現ドリフト)を示した。一方、攻撃者として強い感情価が付与されると神経応答の安定性が高まった。これは、単に「誰かを覚えている」という記憶に、「避けるべきだ」という動機づけ情報が加わることによって、その個体に対する神経表現が一時的に安定化する可能性を示している。
本研究の新規性とその限界
従来の社会的敗北研究では、攻撃経験後に他個体を広く避ける「全般性社会回避」が主な研究対象であった。本研究では、それとは異なり、以前から知っている特定個体の感情価だけを変更し、その個体のみを選択的に避けるモデルを確立した。さらに、社会記憶エングラムとBLA恐怖ニューロンの間に形成されるシナプス可塑性を、エングラム操作、AMPA/NMDA比、optical-LTD、CaMKII阻害という複数の方法から因果的に検証した点も重要である。加えて、BLAでは「既存細胞の発火強度」、NAcD2Rでは「応答細胞集団の再編」という異なる神経コードが用いられることを示し、社会的感情価が回路を下るにつれてどのように情報変換されるかを明らかにした。本研究にはいくつかの課題が残されている。第一に、すべての実験が雄マウスのみで行われている。実験には12~20週齢、24~30 gの雄マウスが用いられており、雌でも同じ回路機構が成立するかは明らかではない。第二に、本研究が主として扱ったのは負の感情価である。安全だった個体を危険な個体として更新する仕組みは詳細に解析されたが、嫌いだった相手を好ましい相手として再評価するような正方向の感情価更新については今後の検討が必要である。第三に、攻撃者はvMHvlニューロンを化学遺伝学的に活性化することで人工的に作られている。この方法は実験条件を統制できる利点がある一方、自然な社会関係の変化を完全に再現するものではない。また、mPFC、VTA、側中隔など、BLAやNAcと結合する他の脳領域が特定個体への感情価更新にどのように関与するかも未解決である。
本研究の応用性
本研究はマウスを用いた基礎神経科学研究であり、そのままヒトの治療法に結びつくものではない。しかし、「危険だった特定人物を避ける」という適応的な反応と、「他者全般が危険だと感じる」という過度な汎化を区別して考えるための神経回路モデルを提供している。特に、事前の社会記憶が存在すると特定個体だけを避ける一方、それがない場合には社会回避が全般化したという結果は、社会不安やトラウマ後の恐怖の汎化を考えるうえで興味深い。また、vCA1に保存された個体記憶そのものを消去せず、vCA1–BLA間のシナプス可塑性を変えることで、その記憶に結びついた感情価を変更できた点は、記憶の再固定化や恐怖消去の神経機構を理解する上でも重要である。本研究は、「誰であるか」という記憶を保ったまま、「その相手をどう感じるか」だけを脳が書き換える仕組みを、シナプスから神経集団まで一貫して示した研究といえる。