背側は大脳皮質へ、腹側は脳幹・脊髄へ―投射・遺伝子発現・神経活動を貫くLCのトポグラフィー
Nature 2026
Topographic structure and function of locus coeruleus noradrenaline neurons
青斑核ノルアドレナリンニューロンのトポグラフィック構造と機能
Zhixiao Su et al. Allen Institute
Abstract
青斑核(locus coeruleus; LC)は、中枢神経系のほぼ全域へノルアドレナリン(noradrenaline; NE)を供給し、覚醒、注意、ストレス、睡眠・覚醒、学習など多様な機能に関与する。従来、LC-NE系は比較的均一な神経調節系として扱われることが多かったが、個々のニューロンの投射先や生理学的性質には大きな多様性が存在する。本研究では、マウスLC-NEニューロンについて、単一ニューロンの全脳軸索投射、遺伝子発現、細胞体位置、電気生理学的性質、強化学習中の神経活動を統合的に解析した。
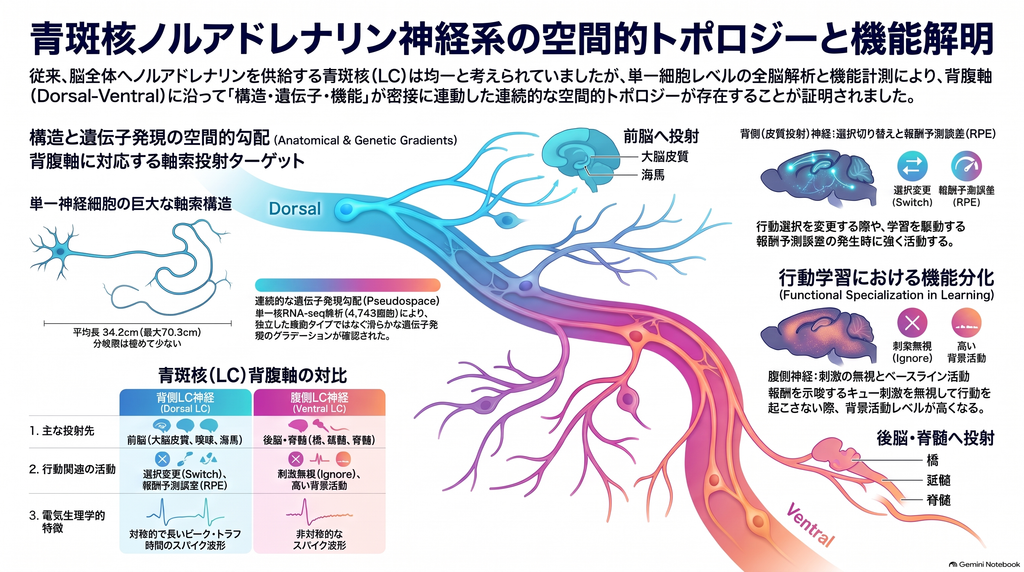
個々のLC-NEニューロンは非常に長い軸索を持つ一方、その投射は無差別に全脳へ広がるのではなく、特定の脳領域群に偏っていた。さらに投射先はLC内で空間的に組織化されており、背側LCのニューロンは主として嗅球、大脳新皮質、海馬など前脳へ、腹側LCのニューロンは橋、延髄、脊髄など後方の中枢神経系へ投射していた。この背腹方向の配置は遺伝子発現の連続的な勾配とも対応していた。
行動実験では、背側LC、とくに大脳皮質へ投射するLC-NEニューロンが、マウスが直前とは異なる選択へ切り替えるswitch行動で強く活動し、さらに学習を駆動する報酬予測誤差(reward prediction error; RPE)を表現していた。一方、腹側LCニューロンでは、報酬獲得機会を知らせる刺激をマウスが無視する試行の前に高い背景活動が認められた。以上から、LC-NE系は単一の一様な「全脳放送系」ではなく、解剖学的構造、分子特性、生理特性、行動機能が共通の空間軸に沿って配置された神経調節系であることが示された。
Abstract
Noradrenaline (also known as norepinephrine) is released throughout most of the central nervous system by neurons in the locus coeruleus1,2,3,4. Here we identified a relationship between the morphologies, gene expression and activity of noradrenergic neurons in locus coeruleus in mice. Axonal projections of individual neurons were extensive but largely confined to subsets of brain regions. Axonal projections and graded gene expression correlated with locations of cell bodies in locus coeruleus. In a behavioural task requiring continuous learning from actions, dorsal locus coeruleus neurons projecting to isocortex were activated when mice switched choices and by reward-prediction-error signals that drive learning. Background activity of neurons in ventral locus coeruleus was higher when mice ignored stimuli indicating potential reward availability. These observations reveal a topographically organized structure and function of a neurotransmitter system and show that it contains learning signals for flexible behaviour.
結果
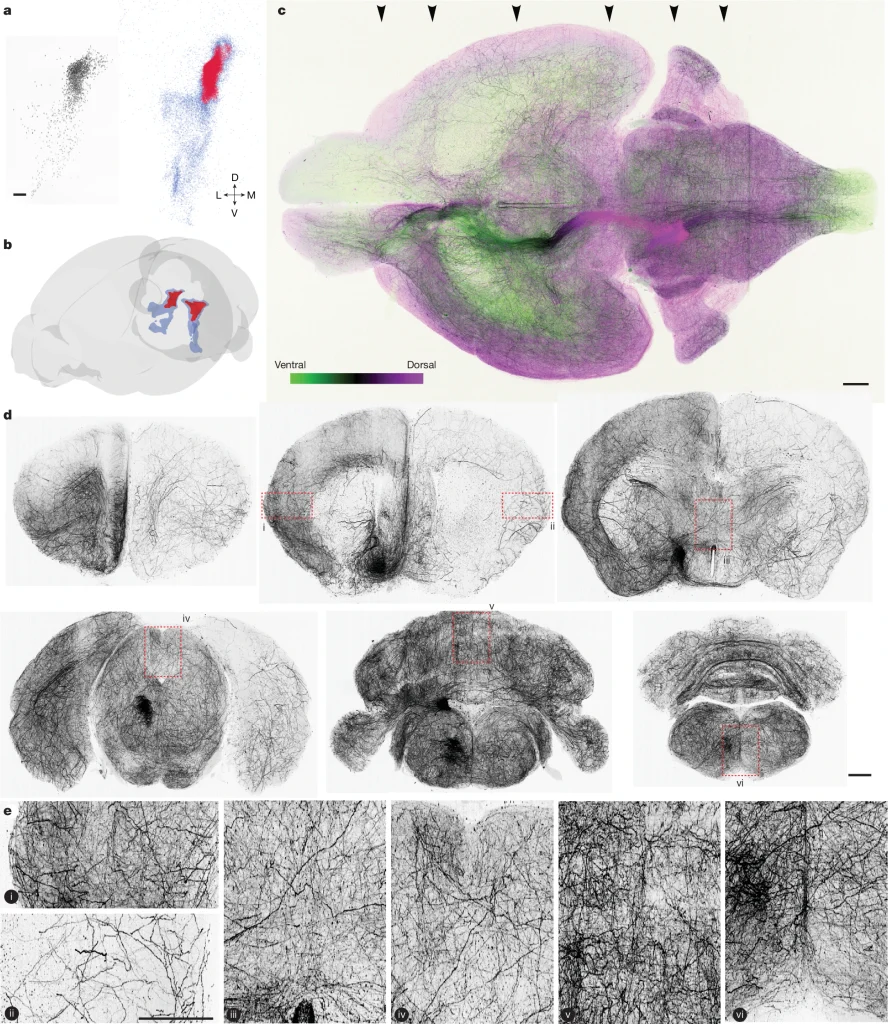
著者らは、Dbh-Creマウスを用いて橋のノルアドレナリンニューロンを標識し、全脳透明化とselective plane illumination microscopy(SPIM)によって34,998細胞、8匹を解析した。LCは体積0.13 mm³の小さな領域であり、橋のノルアドレナリンニューロンのおよそ3分の2を含んでいた。LC内の細胞数は1,507 ± 55個、sub-coeruleusでは367 ± 95個であった。LCからの軸索は線条体を除く中枢神経系の広範囲に認められたが、投射密度には領域差が存在した。
次に、132個のLC-NEニューロン、4匹のマウスについて単一ニューロンレベルで全軸索形態を再構築した。個々のニューロンの軸索長は平均34.20 ± 12.83 cmに達し、最長の細胞では70.32 cmであった。一方、軸索分枝は17.7 branches per cmと比較的少なく、1,549個の他の中枢神経系ニューロンの32.6 branches per cmより有意に低かった(ANCOVA, P = 3.9 × 10⁻¹⁶⁰)。つまりLC-NEニューロンは、非常に長い軸索を持ちながら、無数の領域へ均一に枝分かれするのではなく、特定の領域群を主要な投射先としていた。
この投射には明確な空間構造が存在した。背側LCのニューロンは嗅球、大脳新皮質、海馬など前脳へ投射し、腹側LCのニューロンは橋、延髄、脊髄へ投射していた。大脳皮質、脊髄などからの逆行性トレーシングによっても、大脳皮質投射ニューロンは背側、脊髄投射ニューロンは腹側に位置することが確認された。したがって、LC内のdorsal–ventral軸が、中枢神経系におけるanterior–posterior方向の投射先へ対応していることになる。
この空間構造が分子的にも存在するかを調べるため、著者らはLC周辺から398,912細胞、40匹を対象にsingle-nucleus RNA sequencingを行い、最終的に4,743個のLC-NEニューロンを同定した。興味深いことに、これらは複数の明確なクラスターに分かれるのではなく、単一クラスター内で遺伝子発現が連続的に変化していた。著者らはこの連続的な転写状態を**pseudospace(0–1)**として定量化した。Epha6、Robo1、Fat3、Ncam2、Hcn1、Scn9a、Trhr、Tacr3など、軸索誘導、細胞接着、イオンチャネル、神経調節受容体に関係する多数の遺伝子がpseudospaceに沿って滑らかに変化していた。
さらにMERFISHによって2,308個のLC-NEニューロンを実際のLC内座標へ配置すると、この遺伝子発現pseudospaceはLCの背腹軸と対応した。逆行性標識した細胞の遺伝子発現を調べても、大脳皮質投射ニューロンは背側LC型、脊髄投射ニューロンは腹側LC型、小脳投射ニューロンはその中間の転写状態を示した。投射構造と遺伝子発現から独立に算出した主軸はいずれも背腹方向を向き、両者の角度差は**20°であった。つまり、LCでは「どこに細胞体があるか」「どこへ投射するか」「どの遺伝子を発現するか」**が共通の空間構造によって結び付けられている。
次に著者らは、この構造が行動中の神経活動にも対応するかを検討した。マウスには、go cue後に左右どちらかをリックすると確率的に水報酬が得られ、その報酬確率が試行ブロックごとに変化する動的強化学習課題を行わせた。1セッションあたりの試行数は平均342試行、範囲は94–800試行であった。マウスは過去の報酬履歴を利用して左右の選択を変化させており、継続的に報酬確率を学習していた。
LC-NEニューロンを光遺伝学的に同定して記録すると、241細胞中240細胞でgo cue後300 ms以内に発火が増加した。しかしtrial前のtonic activityには空間差があった。go cueに対してリックせず刺激を無視したignore trialの前にはLC-NE活動が高く、この傾向はとくに腹側LCで強かった。細胞位置とrespond–ignore活動の関係は線形モデルでR² = 0.152, P = 1.4 × 10⁻³であった。
一方、直前と同じ方向を選ぶstay trialと、逆方向へ選択を変えるswitch trialを比較すると、switchで活動が高いニューロンは背側LCに偏っていた。この空間依存性はR² = 0.168, P = 3.0 × 10⁻⁴であり、投射構造の主軸とはr = 0.37, P = 4.4 × 10⁻⁵、遺伝子発現の主軸とはr = 0.35, P = 1.3 × 10⁻⁴で相関した。さらに大脳皮質へ投射することをantidromic stimulationで同定した単一LC-NEニューロン、および前頭前皮質のLC-NE軸索のCa²⁺活動でもswitch > stayが確認された(Fisher’s exact test, P = 7.8 × 10⁻⁵)。
さらに重要なのが、報酬結果に対する活動である。LC-NEニューロンの76.8%でreward/no rewardに関連する有意な回帰がみられた。著者らが強化学習モデルから報酬予測誤差(RPE)=実際の報酬-予測された報酬を算出すると、RPEは次の試行における選択方策の変化と強く相関した(ρ = 0.84, P = 0.0;論文記載値)。
LC-NEニューロンには、報酬によって興奮し、予測された報酬価値が高いほど応答が弱くなる、すなわちRPEに対応する細胞群と、予測値にはあまり依存せず無報酬そのものに応答する細胞群が存在した。そしてRPE型の活動を示すニューロンは大脳皮質へ投射する背側LCに偏っていた。前頭前皮質prelimbic cortexで測定したLC-NE軸索Ca²⁺活動もRPEと相関し、大脳皮質投射ニューロンおよび皮質LC-NE軸索はLC-NE全体と比較して有意にRPE方向へ偏っていた(Fisher’s exact test, P = 5.7 × 10⁻³)。以上から、前頭皮質には背側LCからRPEを表現するノルアドレナリン信号が入力することが示された。
議論
本研究は、LC-NE系を「少数のニューロンが全脳へ同一のノルアドレナリン信号を一斉に送る均一な系」と考える従来の単純なモデルを大きく修正するものである。LCでは、細胞体位置、軸索投射、遺伝子発現、電気生理学的性質、行動中の情報表現が共通する空間軸に沿って組織化されている。背側LCからは主として前脳へ、腹側LCからは脳幹・脊髄へ投射し、その分子特性と機能も連続的に変化する。
とくに興味深いのは、背側LCから大脳皮質へ送られる信号が**reward prediction error(RPE)**を表現していた点である。RPEは強化学習において、予測していた結果と実際の結果との差を表し、内部の価値推定を更新するための代表的な学習信号である。これまでRPEは中脳ドーパミンニューロンと大脳基底核との関係で研究されてきた。一方、ドーパミン投射は齧歯類の大脳皮質では比較的限られている。本研究は、ノルアドレナリンが皮質へRPEを広範囲に伝える別の学習系を構成している可能性を示している。
著者らは、皮質と大脳基底核が、それぞれノルアドレナリンとドーパミンという2つの主要なカテコールアミンから相補的な学習信号を受け取る可能性を提唱している。この二重構造によって、皮質と基底核が異なる時間スケールで学習を行う階層的な学習システムを形成している可能性がある。
また、本研究ではLC-NEニューロンを多数の離散的な「細胞型」に分類するのではなく、単一の細胞クラス内部に連続的な遺伝子発現勾配が存在することを示した。このような空間的な遺伝子発現勾配は、大脳皮質、海馬、視床、線条体などでも報告されており、離散的な細胞型の内部に連続的な空間変化を組み込むことが、中枢神経系に共通する組織原理である可能性がある。
一方、LC-NEニューロンがなぜ場所によって異なる活動を示すのか、その上流機構はまだ十分に分かっていない。LCには前頭皮質、扁桃体、小脳、視床下部、橋、延髄など多数の領域から入力があり、特定のLC-NEサブ集団への選択的入力がswitch、RPE、no rewardなど異なる信号を形成している可能性がある。また、本研究で示されたRPEとの関係は主として相関的であり、RPEを担うLC→皮質経路を選択的に操作した際に学習そのものが変化するかについては、今後の因果的検証が必要である。
以上から、本研究は青斑核を単一の「覚醒中枢」や「全脳ノルアドレナリン放送局」として捉えるのではなく、投射先と行動機能の異なる出力チャネルが空間的に配置された神経調節システムとして捉え直すものである。とくに背側LC→大脳皮質経路が、選択の切り替えと報酬予測誤差という学習に重要な信号を伝えることを示した点は、ノルアドレナリンによる認知柔軟性と学習制御を理解する上で重要な知見である。